یادتان هست کی و چگونه برای
اولین بار به علم و زیستشناسی علاقه پیدا کردید؟
من در میامی بزرگ شدم. آب و
هوای آنجا بسیار گرم و استوایی است. ما بچهها
به حیاطخلوت خانههای همه همسایهها دسترس داشتیم و در آنجا به دنبال
پرندگان، سوسمارها و مارها و چیزهایی از این قبیل بودیم. میامی شهری توریستی و پر
از پارک است. جنگل طوطیها، جنگل میمونها و یک مارخانه در آنجا وجود داشت.
گرچه همه اینها مالک خصوصی داشتند، اما چشمی
هم به جهانگردی داشتند.
پارک موسوم بهجنگل طوطیها نزدیک خانه ما بود. حدود ۵۰ تا ۱۰۰
هکتار زمین داشت و پارکی باز بود. پرندگان آن عجیب و غریب و آزاد بودند. قفسی در
آنجا نبود.
آیا حیوانات از این پارکهای خصوصی فرار میکردند تا وارد منطقه شما شوند؟
بله. آن حیاطخلوتها در واقع جنگل من بود. حیوانات همیشه
فرار میکردند. در بسیاری از موارد، من
به حیاطخلوت میرفتم و پرندههای عجیب از جنگل طوطیها را در آنجا میدیدم.
آیا کتاب نقشی در شیفتگی شما به زیستشناسی داشت؟
فکر میکنم ۱۱ یا ۱۲ ساله بودم که والدینم
کتابی درباره داروین، تکامل و برخی اسرار زیستشناسی بهمن دادند. در این کتاب مطالبی درباره
ساعتهای زیستی برای تنظیم حرکات گلها و نیز کمک به پرندگان و حشرات برای
جهتیابی وجود داشت؛ اما مسلماً
درباره سازوکار این ساعتها در این کتاب چیزی نوشته نشده
بود!
آیا والدین شما تشویق میکردند که بهعلوم و زیستشناسی علاقهمند شوید؟
بله، تشویق میکردند. من همیشه به آنها میگفتم که کتابهایی برایم بخرند که مربوط به طبیعت باشند. خیلی وقتها کتابهایی میخریدند که پر بودند از عکسهای حیوانات وحشی؛ اما به خاطر دارم که
یک بار کتابی بزرگ در یک کتابفروشی دیدم که رویش نوشته شده
بود «عجایب زندگی روی زمین». این اثر را تایم لایف منتشر کرده بود و پر بود از
تصاویر رنگارنگ از تنوع جانداران دریایی و خشکیزی.
موضوع اصلی کتاب، داروین و نظریه
تکامل بود و اینکه چگونه همه این جانداران تولید مثل میکنند. یک بخش آن هم درباره وراثت و
ژنتیک و یک بخش دیگر آن درباره زیستشناسی مولکولی بود.
فکر میکنم ۱۱ ساله بودم که برای اولین بار در
این کتاب با DNA آشنا شدم. هنوز این کتاب را دارم. بهنظرم تاریخ انتشار آن حدود سال ۱۹۶۲
باشد، شاید هم سال ۱۹۶۳. مدلها، تصاویر و توضیحاتی از DNA داشت. حتی مقداری هم درباره هیبرید کردن DNA نوشته بود.
چند صفحه هم داشت در مورد
آزمایشهای مارمور و داتی درباره
دناتوراسیون DNA9. به یاد دارم که مجذوب این فصل و
آزمایشهای مربوط به جدا کردن دو رشته DNA و تشکیل مجدد رشته مکمل آن شدم. البته، سالها بعد، با نویسنده کتاب، جولیوس مارمور10
ملاقات کردم. او همکار همسرم شد و من فرصت داشتم که این کتاب را به او نشان دهم.
آیا پدر و مادرتان وسایلی علمی
مانند میکروسکوپ برای شما میخریدند؟
بله، میخریدند؛ میکروسکوپ همراه با چند اسلاید
آماده مثل سلولهای پیاز و مانند اینها که با آنها میتوانستم ساختار سلولها را مشاهده کنم. البته، من خیلی زود
شروع به تهیه اسلایدهایی برای مشاهده سلولهای
خونی کردم. بهیاد دارم چقدر از اینکه توانسته
بودم سلولهای خون خودم را ببینم، شگفتزده شدم. یک کیف تشریح هم داشتم که
ابزارهای لازم برای تشریح قورباغههای مرده را داشت.
یک مجموعه شیمی هم داشتم. میتوانستم بهراحتی گاز هیدروژن را از واکنشها بهدست بیاورم و با کبریت انفجارهای کوچک
ایجاد کنم. به خاطر دارم که به پدرم التماس میکردم مقداری پتاسیم کلراید برای من
بیاورد، چون میخواستم از پتاسیم کلراید اکسیژن
آزاد کنم. این جور مواد در مجموعههای شیمی، یا در فروشگاههای سرگرمی که مواد شیمیایی میفروشند یافت نمیشوند؛ چون میتوانند انفجار ایجاد کنند. پدرم بالاخره
یک بطری پتاسیم کلراید از یکی از همکارانش در شرکت گرفت و برایم آورد و من شروع به
استفاده از آن کردم.
انفجاری که من ایجاد کردم، کف
سفالی اتاق را تحریب کرد. یادم نیست چه ترکیباتی با هم مخلوط کردم؛ اما یادم هست
چیزی شروع به حباب زدن کرد و گلولههایی آتشین از مایع به کف سفالی
پرتاب کرد. مادرم از آزمایشهای اولیه من بهکلی ناامید شد. از آن به بعد مجبور شدم
ادامه آزمایشهایم را در گاراژ انجام دهم.
آیا بهساختن چیزها هم علاقهمند بودید؟
وقتی ۱۱ یا ۱۲ سالم بود، به
ماشین علاقه داشتم. یک بار یک اسکلت دوچرخه از یک فروشگاه دست دوم فروشی دوچرخه در
نزدیکی خانهمان خریدم و یک موتور گازوییلی
یک ماشین چمنزنی روی آن سوار کردم.
شما در سال ۱۹۷۱ از دانشگاه
تگزاس در آستین فارغالتحصیل شدهاید؟
بله، درست است. سال آخر
کارشناسی یک دوره ژنتیک گذراندم. در آنجا دورههای تاکسونومی و فیلوژنی هم وجود داشت؛
اما بیشتر دورهها توصیفی بودند، تنها ژنتیک
بود که میشد عمقی آن را مطالعه کرد و از
سازوکار مولکولها سر در آورد. من از «برک جود11»
که از استادان جانورشناسی من بود، خواستم که یک پروژه تابستانی انجام دهم. دانشگاه
تگزاس دورههای آموزشی تابستانی داشت که میتوانستم در آنها اسم بنویسم و تحت نظر یکی از اعضای
هیئتعلمی کار کنم.
پروژه تحقیقاتی تابستانی
تحقیق شما با «برک جود» چگونه
انجام شد؟
پروژه تحقیقاتی تابستانی من
بسیار جالبتر از آن بود که تصورش را میکردم. من سؤالات تحقیق را مطرح میکردم و کار را بهجلو میبردم. احساس میکردم که به طور فعال در تحقیقاتِ جدید
درگیر شدهام، تحقیقی که واقعاً پویا و در
حرکت بود و فقط تکرار چیزهایی که در کتابهای
درسی وجود داشت، نبود. در واقع، «برک جود» به من اجازه میداد سؤالات جدیدی بپرسم. من خیلی علاقهمند شده بودم و او و دانشجویان پسادکتری
او مرا تشویق میکردند که کار را ادامه دهم. من
در طول آن تابستان با این پروژه خوش گذراندم. در آن زمان در پی ایجاد نوعی جهش برای
تعیین جایگاه یک گروه از ژنها بودم.
چه شد تصمیم گرفتید روی زمینه
ژنتیک مولکولی و ساعت زیستی مگس سرکه تمرکز کنید؟
البته، کمی بعد روی ساعتهای زیستی متمرکز شدم؛ اما قطعاً در
همان تابستان بود که تصمیم گرفتم برای بررسی مشکلات موجود در ژنتیک مگس سرکه روی این
حشره کار کنم. چیزی که توجه مرا جلب کرد، وجود مقدار حیرتانگیزی DNA در کروموزومهای یوکاریوتی بود؛ بسیار بیشتر از آنچه
در باکتریها وجود دارد. سپس چیستی و
چگونگی «ساختار ژنهای یوکاریوتی» توجه مرا به خود جلب کرد. در پی آن بودم ژنهای یوکاریوتی چه تفاوتهایی با ژنهای باکتریایی دارند؟
شما در سال ۱۹۷۵ برای گذراندن
دوره پسادکتری در زمینه زیستشناسی مولکولی به استنفورد
رفتید، درست است؟
درست است. من در سال ۱۹۷۱
برنامه دکترای خود را در دانشگاه تگزاس آغاز کردم و در سال ۱۹۷۵ فارغالتحصیل شدم. در ماه اوت همان سال، به
استنفورد نقلمکان کردم تا به عنوان پسادکتری
در آنجا کار کنم. هیچ کدام از تحقیقاتی که در تگزاس انجام داده بودم، در زمینه
زیستشناسی مولکولی نبود. همه آنها در زمینه ژنتیک کلاسیک بودند. من
توانسته بودم با این آزمایشهای ژنتیک کلاسیک بدون لمس حتی
یک مولکول و فقط با انجام آمیزش مگسهای سرکه با یکدیگر و تعیین نقشه
ژنتیک کروموزومها، اطلاعات زیادی در مورد ژن پریود12 بهدست آورم.
هنگام گذراندن دوره پسادکتریام فقط در یک آزمایشگاه کار میکردم. در آنجا هم با کس دیگری در این
باره حتی صحبت نمیکردم؛ زیرا مطمئن بودم که تنها
راه برای بهدست آوردن اطلاعات معنیدار در این زمینه، کاربرد روشهای جدیدی است که باید در استنفورد
ایجاد میکردم. من به مدت ۲ سال آنجا
مشغول بودم. در این مدت روی اولین DNA کلونشده
مگس سرکه که از کتابخانه ژنی آن بیرون کشیده بودم، کار میکردم.
بعد، در ژانویه ۱۹۷۸ به اینجا
آمدید؟
دقیقاً. دو سال بعد متوجه شدم
که میتوانم برخی از تکنیکهای ژنتیک قدیم و ژنتیک کلاسیک را که در
تگزاس کار کرده بودم با دانش زیستشناسی مولکولیِ استنفورد ترکیب
کنم و ژنهای خاصی را در مناطق مورد
مطالعه کروموزوم ایکس بررسی کنم.
... و تصمیم گرفتید روی ژن
پریود کار کنید؟
در واقع، ما روی دو ژن کار میکردیم، یکی ژن پریود (per) و دیگری ژن notch. متوجه شدم که راههایی برای پیدا کردن جایگاه ژن پریود با
استفاده بازآرایی کروموزومها وجود دارد. ما استخراج هر دو
این ژنها را شروع کردیم؛ اما در نهایت
نسبت به ریتم شبانهروزی بیشتر کنجکاو شدم و بیشتر
نیروی خود را روی آن گذاشتم. من در سال ۱۹۸۱ تصمیم گرفتم تا در واقع جایگاه ژن
پریود را شناسایی کنم.
بین zeste و white
چگونه به per که سالها بعد تبدیل به اولین ژن CLOCK در
مگس سرکه شد، علاقمند شدید[۲]؟ آیا همه این موارد از زمانی آغاز شدند که شما گزارش
دادید با توجه به اثرهای آنها روی ریتمهای خروج از تخم، جهش در جایگاه per با نقطههای انفصال چند بازآرایی کروموزومی
مرتبط است؟
علاقه من به ژن پریود در سال
۱۹۷۲ به پایان رسید و این درست بعد از انتشار گزارش ران کونوپکا13 و
سیمور بنزار14 و جزو مجموعه مقالات آکادمی ملی علوم (15 PNAS ) بود [۳]. جایگاههای اولیه کروموزومی که آنها در این مقاله تعیین کرده بودند،
پیشنهاد میکردند که ژن تنظیمکننده این ریتمهای زیستی ممکن نزدیک جایگاهی باشد که
من تلاش میکردم از جهش و عملکرد جهشها اشباع کنم؛ یعنی بین دو ژن به نامهای white و zeste. من سعی میکردم بفهمم که آیا ممکن است ژن
دیگری در آن فاصله وجود داشته که از دست رفته باشد، چون نمیتوانند جهش یابند و باعث میرایی جنینی
شوند.
شما باید نسبت به کارهای
«کونوپکا» و «بنزار» کنجکاو میبودید؛
چون جهشهایی پیدا کرده بودند که بر
رفتار مگس سرکه تأثیر میگذارند.
من دنبال این بودم بدانم که آیا
آنها از این منطقه که من روی آن
کار میکنم نقشهبرداری کردهاند، آیا اینها ژنهای تغییریافتهای هستند که من قبلاً آنها را میشناختم یا اینکه آیا چیز کاملاً جدیدی
هستند. بنابراین، از «کونوپکا» و «بنزار» خواستم که جهشیافتهها را بفرستند. کونوپکا استقبال کرد و
فرستاد. من متوجه شدم که میتوانم با استفاده از مجموعهای از کمبودها و مضاعفشدگیهای جزئی کروموزومی آن منطقه را شناسایی
کنم. متوجه شدم که میتوانم با استفاده از این توالی
کروموزومی بازآراییشده، ژن per را که در واقع جایی بین جایگاههای zeste و white قرار دارد، پیدا کنم.
... و بالاخره موفق شدید دقیقتر از ژن پریود نقشهبرداری کنید.
بله. من یک جابهجایی کروموزومی پیدا کردم که از نوک
کروموزوم ایکس به کروموزوم شماره چهار رفته و با این کار، یک جهش ایجاد کرده بود:
به بیان دیگر، وقتی آن جابهجایی را یافتم و آن را بهعنوان هتروزیگوت جهش ریتمی که «کونوپکا»
استخراج کرده بود، امتحان کردم، متوجه شدم که مگسهایی را که رفتار عادی شبانهروزی داشتند، معیوب کردهام.
با این کار موقعیت دقیقتر ژن per را تعیین کردید.
دقیقا. من ژن پریود را در فاصله
بین دو ژن شناختهشده قبلی نقشهبرداری کردهام و بنابراین، چند جهش مرگبار در ژنهای مجاور را امتحان کردم. هیچ یک از آنها با جهش ژن پریود برهمکنش ندارند. این
خیلی مهم بود، چون نشان میداد که ژن پریود نمیتواند فنوتیپ مرگبار تولید کند.
بنابراین، من جهشی در یک نقطه انفصال داشتم.
«رون کونوپکا» سه جهش داشت: جهشهای per0 ، pers وperl . جهش per0 باعث بینظمی فعالیتهای جنبشی و خروج از تخم میشود. جهش Perl ریتمی است؛ اما دوره ریتمهای فعالیتهای جنبشی و ریتمهای خروج از تخم ۲۹ ساعت طول میکشد و جهشیافتههای pers دورههای
کوتاهمدت ۱۹ ساعتی دارند [۳].
همه این جهشها فنوتیپ رفتاری نشان میدهند؟
قطعاً؛ انگار این ژن به این
رفتار اختصاصداده شده است. این یافته تصور
مرا بهکلی تغییر داد. با استفاده از
نقصهای همپوشان که در هر نقطه انفصال از هر یک از
بازآراییهای کروموزومی وجود دارد، یک
فنوتیپ بینظمی را بهدست آوردیم. این اثبات میکند که از دست دادن این ژن بینظمی ایجاد میکند.
همچنین، یک جابهجایی خاص و دو نقص به ما این امکان را
داد که بدانیم کدام منطقه از DNA باید جایگاه پریود باشد. بنابراین، فاصله
بین این دو نقطه انفصال در کروموزوم، به نامهای
TEM و JC43، شامل جایگاه per است [۲].
بنابراین ممکن است per با هر یک از چندین واحد رونویسی آن منطقه
ناقص DNA مرتبط باشد.
بله، دقیقاً. کمک واقعی، انتقال
JC43
بود، چرا که به جای حذف بخشی از منطقه، بخش چپ کل منطقه
را گرفته و به کروموزوم چهارم پیوسته است و چیزی که ما متوجه شدیم، این بود که clock در این مگسها فعال است. این انتقال، ریتمهای رفتاری بسیار طولانی داشت. این نشان
داد که هنوز مقداری کارکرد برای ژن پریود باقی مانده و وجود دارد.
شکستگی در جابهجایی باید از روش عملکرد ژن پریود تأثیر
گرفته باشد. پس وقتی به دنبال تغییر در روشی که در آن واحدهای رونویسی در آن ناحیه
رفتار میکنند، متوجه شدیم که با این
جابهجایی در انتهای 3’ یکی از ژنها با این ترانسلوکاسیون در انتهای واحد
رونویسی از بین رفتهاست. یک رونویسی ۷۰۰۰ جفت باز
هم وجود دارد که JC43 در یک انتهای آن جدا شده است [۲].
این مقالهای بود که در آوریل ۱۹۸۴ همراه با
دانشجوی پسادکتری خود منتشر کردید [۲]؟
دکتر یانگ: درست است. پیشبینی شده بود که per هنوز میتواند تولید شود، اما کنترل آن میتواند با توجه به تغییر در توالیهای نزدیک به یک انتهای RNA پیامرسان
تغییر یابد. بنابراین، این اولین جهش پریود بود که بهصورت فیزیکی نقشهبرداری شد و معلوم شد که بر یکی از
محصولات جایگاه per تأثیر میگذارد [۲].
دستگاهی بهاندازه یک جعبه کفش
ممکن است در مورد روند غربالگری خود که شامل آنالیز زمان خروج از
تخم بود؛ اما بعدها آنالیز فعالیتهای
جنبشی مگسها را نیز دربرگرفت، توضیح
دهید؟
در سال ۱۹۸۴، ما باید مگسها را که از شفیره خارج میشدند، بهصورت دستی جمعآوری میکردیم. در جمعیت مگسهای سرکه خروج نوع وحشی از تخم با ریتم
شبانهروزی انجام میشود. آنها صبح زود خارج میشوند و بنابراین، جهشیافتههای ژن پریود این کار را اشتباهی انجام
میدهند. این یکی از یافتههای ما بود که برای دنبال کردن حشرات
جهشیافته به کار میبردیم.
تحقیق دیگری که انجام دادیم،
دیدبانی همزمان پنج مگس بود. در اینجا توانستیم وسیلهای بسازیم که یک لوله کوچک شیشهای شبیه یک پیپت حدوداً ۳ اینچی در آن
قرار داشته باشد. در یک طرف آن پیپت شیشهای،
یک دیود تولیدکننده نور وجود داشت که نور قرمز تولید میکرد. در طرف دیگر پیپت یک ترانزیستور
نوری وجود داشت. اگر یک مگس متحرک طول ۵×۵۰ سانتیمتری پیپت شیشهای شفاف را طی میکرد و پرتو را قطع میکرد، یک تکانه الکتریکی تولید میکرد.
چگونه حرکات را ثبت میکردید؟
سیم دستگاه به یک ماشین بزرگ
متصل بود؛ این ماشین که یک کاغذ چارت تولید میکرد. طی ۲۴ ساعت، چند فوت کاغذ را با
پنج خط قرمز از پنج خودکار موازی داشتیم. با این دستگاه میتوانستیم پنج مگس را در یک زمان کنترل
کنیم. وقتی که یک تکانه الکتریکی وارد دستگاه میشد، قلم حرکت میکرد.
ما هم مگسهای شاهد داشتیم و هم مگسهای آزمایشی. ما مگسهای بیریتم در اختیار داشتیم. در پایان سال
۱۹۸۴، چیزی که ما داشتیم، مگسهایی بود که واحد رونویسی بهآنها تزریق شده بود و چیزی که میدیدیم، میبایست ژن پریود از جابهجایی JC43 باشد.
تصور میکنم هر روز صبح نگاهی به نوارهای ثبتشده میکردید.
بله! هر روز صبح، کاغذهایی را
که شب کف اتاق ریخته میشد، جمع میکردیم و به خطوط جوهر قرمز نگاه میکردیم تا جاهایی را در آنها قلمها حرکت کرده بودند و جایی را که قلمها بیحرکت بودند، مشاهده کنیم. زمانی که مگسها به اطراف حرکت میکردند، قلمها تکان خورده بودند و خطوط مستقیم
مربوط به زمانی بودند که مگسها آرام بودند و استراحت میکردند. سپس کاغذ را برش میدادیم و در فواصل ۲۴ ساعته قرار روی هم
قرار میدادیم تا بتوانیم ببینیم که چه
الگوهای رفتاری برای هر مگس وجود دارد.
مگسهای وحشی ۱۲ ساعت فعال و ۱۲ ساعت
غیرفعال هستند. بارها و بارها این الگو را روی این اسناد مشاهده کردیم. مگسهای شاهد که بیریتم بودند، هیچ کدام از این موارد را
نشان نمیدهند؛ آنها فقط به شکل غیرعادی فعال میشوند و به شکل غیرعادی استراحت میکنند. در مقابل، مگسهایی که DNA کلونشده
را از ژن پریود دریافت کرده بودند، الگوهای خود را برگردانده بودند، بنابراین، آنها بهطور متناوب روزها فعال و شبها غیرفعال بودند.
اندازه این دستگاه چقدر بود؟
تقریباً بهاندازه یک جعبه کفش. همه این کارها با
مگسهای درون یک انکوباتور تاریک
انجام میشد؛ مگسها نمیتوانستند نور را ببینند و در نتیجه نمیتوانستند چرخههای نور و دما را تجربه کنند. محیطزیست آنها پایدار نگهداشته میشد. بنابراین، میدانستیم آنچه اندازهگیری میکنیم، توانایی درونی مگسهای سرکه بود و علاوه بر آن، میتوانستیم از این DNA کلونشده
برای انتقال تواناییهای درونزاد از یک مگس به مگس دیگر استفاده
کنیم.
این وسیله در اوایل دهه ۱۹۸۰
مورد استفاده قرار گرفت. در سال ۱۹۸۴ دو مقاله درباره آن منتشر کردیم، که مقاله
اصلی در نیچر منتشر شد [۴].
ریتم جنبشی مگسهای سرکهای که در تاریکی ممتد متولد میشوند و رشد میکنند، مانند بزرگسالان است. درست است؟
بله، درست است. این را در واقع
در مقالهای که در فوریه ۱۹۹۲ در PNAS منتشر کردیم، توضیح دادیم [۵]. متوجه شدیم
که مگسهایی که هرگز نور را در زندگی
خود ندیدهاند، ریتمهایی جنبشی درست شبیه مگسهای وحشی نشان میدهند. فقط نمیتوانیم فاز نوسان ریتمها را پیشبینی کنیم، مگر آنکه بیریتمی جمعیت را بهدست آوریم؛ اما این بهخاطر ریتمهای فردی است که با هم متفاوتاند [۵].
یافتن مولکول ساعتساز
ده سال پس از جداسازی ژن per در مارس ۱۹۹۴، تیم شما دو مقاله برجسته در
ساینس منتشر کرد [۶ و ۷]. شما در این مقاله کشف یک مگس جهشیافته در ژن پریود را به نام TIM را روی کروموزوم شماره ۲ گزارش دادید.
در این دو مقاله اول در سال
۱۹۹۴، نشان دادیم که چرخه ژن per در مگسهای جهشیافته در ژن timeless متوقف میشود. به عبارت دیگر، جهش در ژن timeless باعث بیریتمی رفتاری و مولکولی میشود. همچنین نشان دادیم که تعداد زیادی TIM باعث ناپدید شدن per میشود.
Per دیگر ساخته نمیشود، حتی اگر RNA پریود وجود داشته باشد. بنابراین، معلوم شد
که عملکرد ژن timeless به نحوی با ژن پریود جفت است [۷].
پس شما سطح بالایی از پروتئین PER را در این الل جدید timeless را نشان دادید.
بله. این هم رضایتبخش بود؛ چون وقتی به دنبال ژن دیگری
بودیم که بر ریتم شبانهروزی تأثیر داشته باشد، به جای
پیدا کردن مسیر جدید، به همان سازوکاری که per درگیر بود، برگشتیم. به همان ساعت برگشتیم، به طوری که ژنهای پریود و timeless
برای اجرای ریتم شبانهروزی همکاری میکردند [۷].
شما یک سال بعد، در سال ۱۹۹۵
نشان دادید که ریتمهای مولکولی per و TIM با جهش در این جایگاهها و ایجاد تغییرات مربوط در چرخههای تولید شده در هر دو جایگاه به هم
وابستهاند [۸، ۹ و ۱۰].
درست است. در سال ۱۹۹۵ سه مقاله
دیگر داشتیم که نشان میدادند جهش per میتواند
باعث ایجاد بیریتمی در چرخههای ملکولی timeless شود [۸، ۹ و ۱۰]. قبلاً نشان داده بودیم که
جهش در ژن timeless باعث ایجاد بیریتمی مولکولی در پریود میشود [۷].
سه دهه بعد
چیزی که تحقیقات درباره ریتم
شبانهروزی از دیدگاه زیستشناسی سیستمها به ما میگویند، این است که یک نوسانساز مولکولی در نورونهای کلیدی مغز روشن میشود و تعداد زیادی از مولکولها را در بافتهای متعدد رهبری میکند تا ریتمهای رفتاری آشکار ایجاد کنند؟
این نشان میدهد که موجودات زنده برای زیستن در مسیر
زمان تعریف شدهاند. هر ساعت از روز، بسیاری از
بافتها فعالیت خود را تغییر میدهند و همه تحت چتر تنظیمی ساعتهای شبانهروزی قرار دارند.
تحقیقات جدیدی که توسط پییر شامبون16 در فرانسه صورتگرفته است، برای من جالب است. این
پژوهشگران نقش باکتریهای همسفره را در همایستایی سلولیِ سلولهای پوششی روده مشاهده میکردند. کار آنها در ماه مه ۲۰۱۳ در نشریه «سلول»
منتشر شد [۱۳].
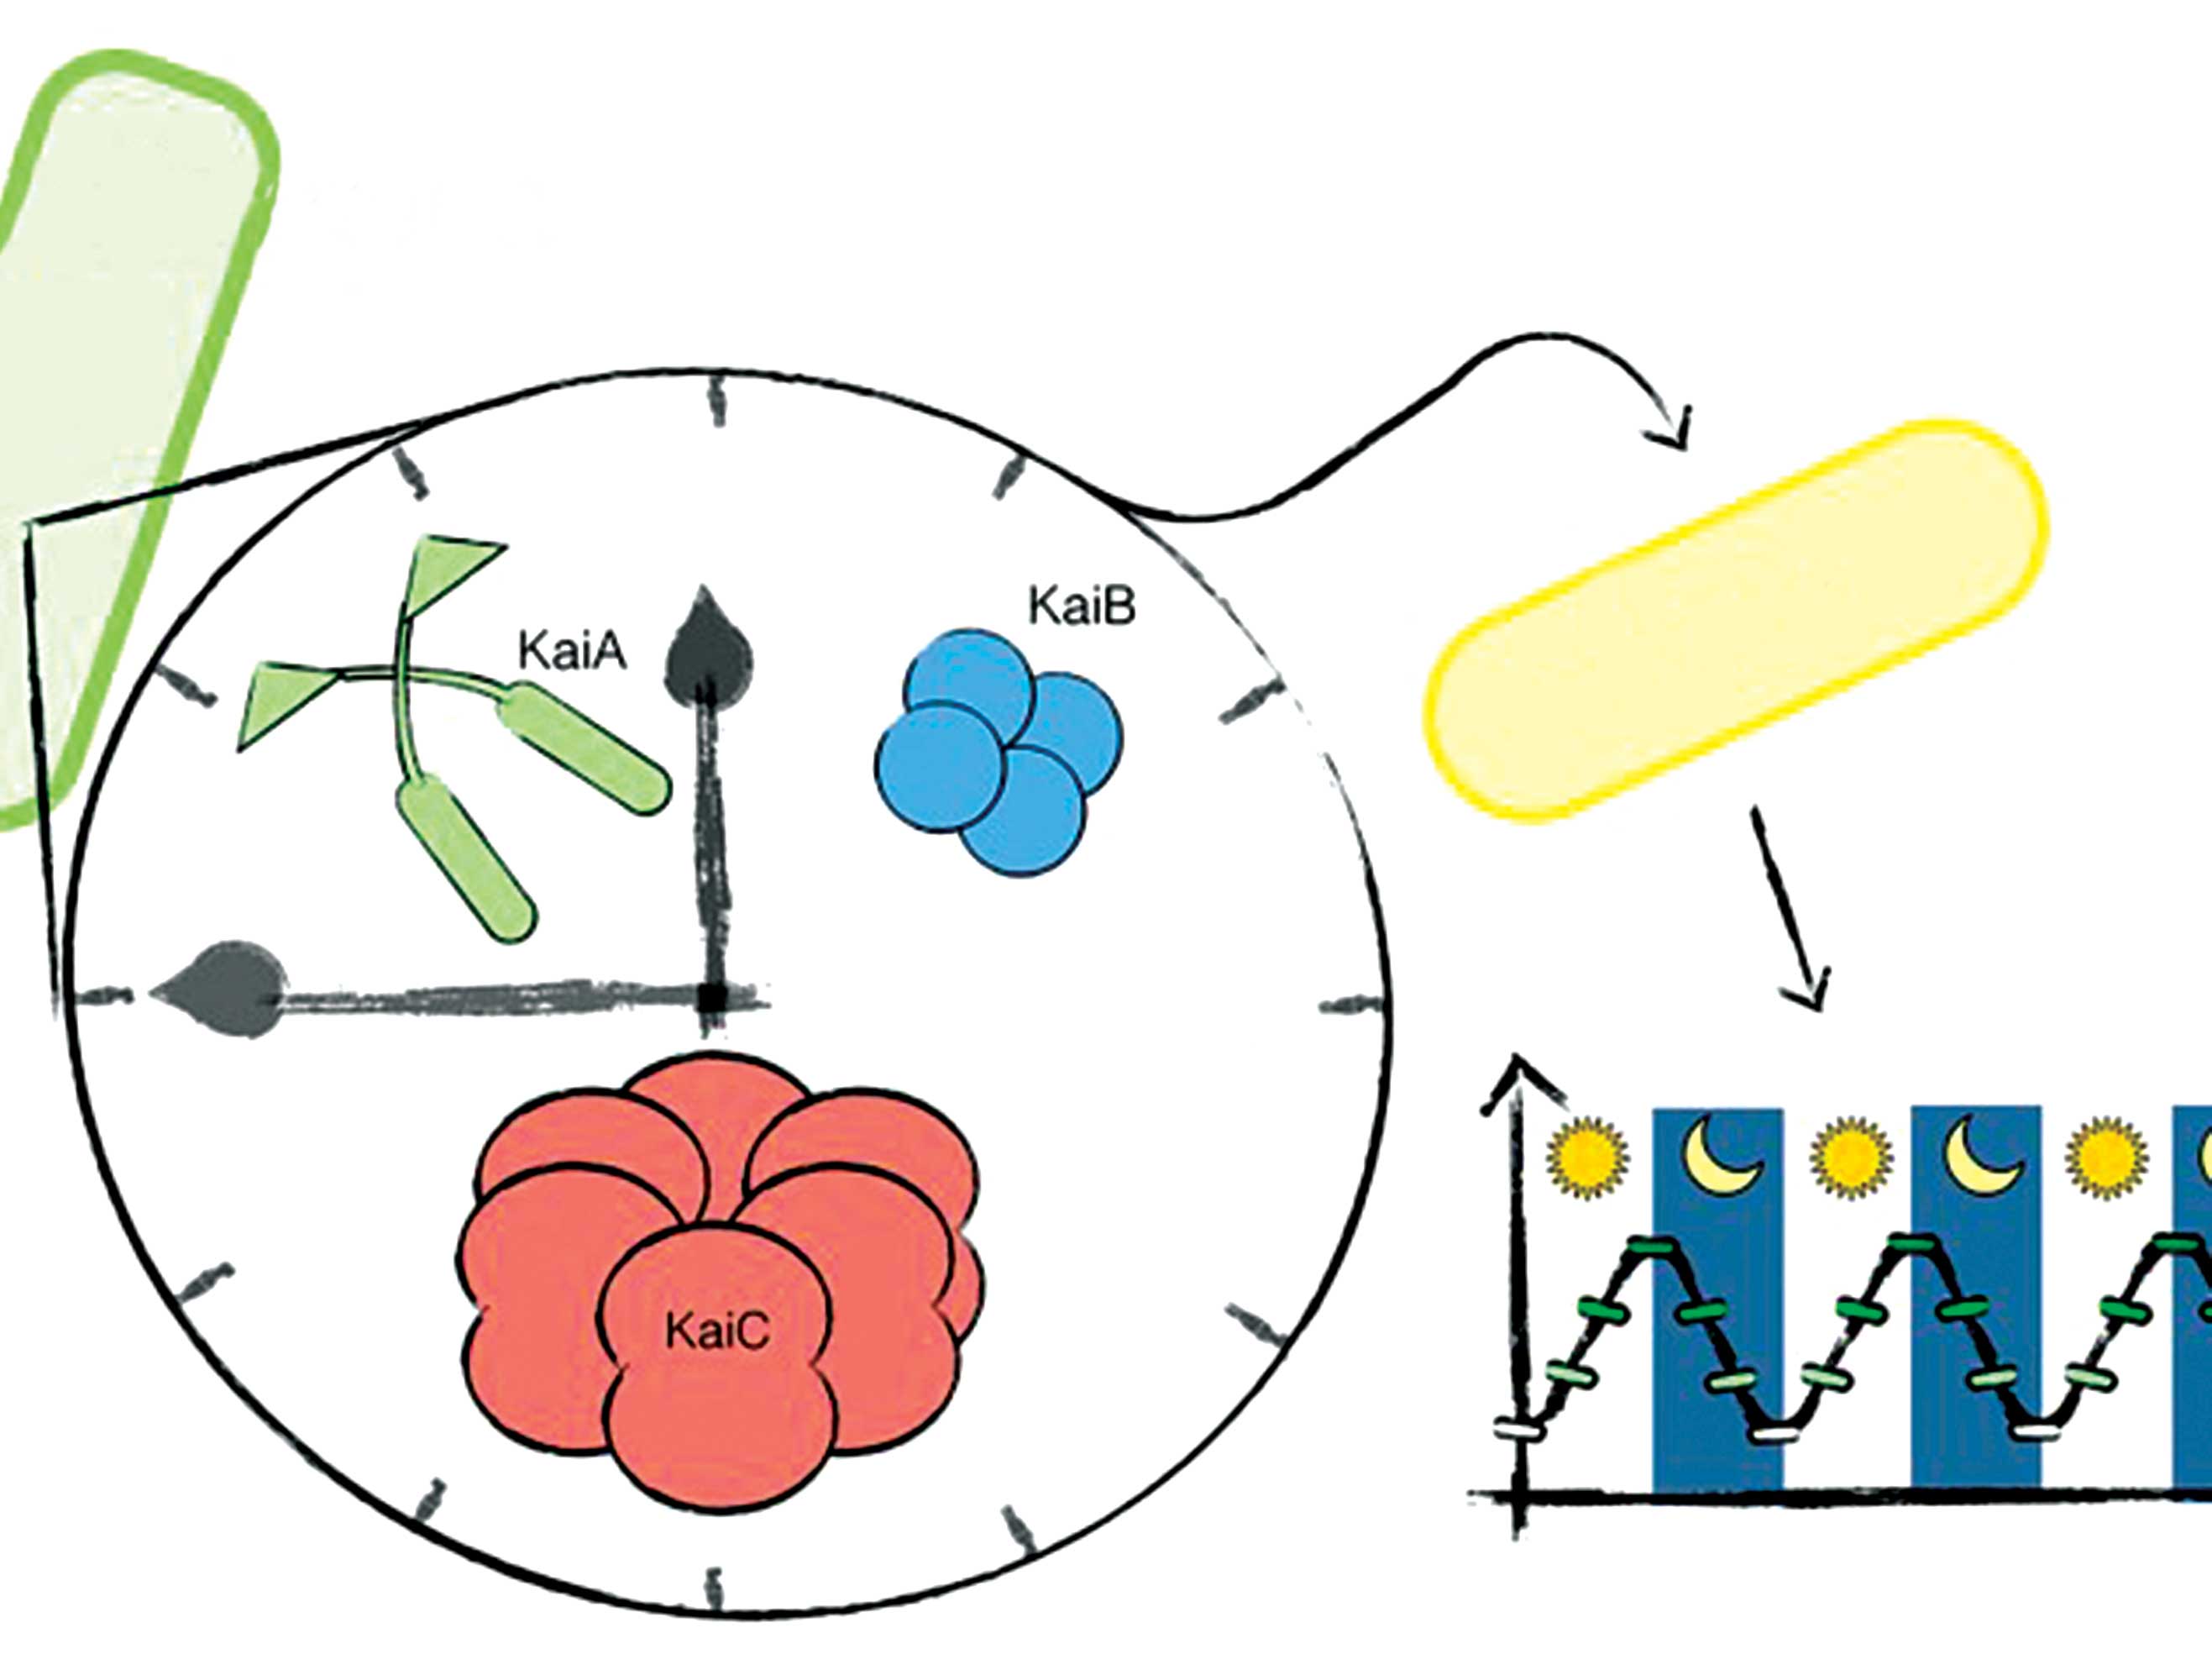
مشخص میشود که ساعتهایی شبانهروزی وجود دارند که تحت نفوذ مجموعه
میکروبهای روده روشن میشوند. این ساعتها در جانداران عاری از میکروب کار نمیکنند. برای من، این نشان میدهد که وقتی میکروبها وجود دارند، سلولهای پوششی روده برای مقابله با وضعیت
محیطی جدید فراخوانده میشوند. برای مقابله با این محیط
جدید میکروبی، باید ژنهایی را روشن کنیم؛ ابتدا یک
برنامه شبانهروزی را که میگوید زمانی که این ژنها روشن شوند، بهکار بیندازیم [۱۳].
شاید برخی از عملکردهای تخصصی
نیاز به هماهنگی بسیاری از ژنها داشته باشند که نه تنها باید
با هم کار کنند، بلکه باید در عین حال تحت کنترل موقتی هم باشند. مهم است که بهصورت آنلاین در یک توالی معین قرار
دارند، یا با هم، یا A بعد از B، بعد از C
و به صورت آنلاین عمل میکنند. بنابراین، ترتیب زمانی بیان ژنها هنگام فعالیت سلول، ریشه در تنظیم ژن
دارد و روشی که سامانههای زنده انجام میدهند، ساعت شبانهروزی است. ارتباط همزیستی بین روده و میکروبهای روده نه تنها شامل نشانههای خارجی باکتریایی است که با گیرندههای سلولهای پوششی برهمکنش دارند، بلکه نیاز به
یکپارچگی ساعت شبانهروزی دارد که پنجرهای موقتی باز میکند و طی آن سیگنالهای اجزای باکتریایی میتوانند توسط گیرندههای سلول پوششی ایجاد شوند.
بیش از ۳۰ سال از آغاز کار شما
در ساعتهای زیستی گذشتهاست. امروزه، تأثیر کار شما باعث شگفتیتان میشود؟ در بسیاری از زمینههای مختلف گسترش یافته است: اختلالات
خواب، سرطان، ایمنی، سوختوساز.
بله همینطور است. وقتی برای اولینبار به این مسئله علاقهمند شدم، بهنظرم یک مشکل رفتاری بود. مطالعات
پستانداران داشتیم که نشان میدهند ما یک منطقه کوچک در مغز،
هسته فوق کیاسمایی هیپوتالاموس را شناسایی کردهایم که ریتمهای فعالیتهای جنبشی را کنترل میکند. من فکر میکنم که بسیاری میتوانند ادعا کنند که همه عملکردهای ساعت
شبانهروزی در آن منطقه کوچک در مغز و
نه در هیچ جای دیگر بدن هستند و این همان ساعت اصلی است.
ما شروع به مشاهده این موضوع
کردهایم که همه چیز میتواند با جداسازی ژن پریود پیچیدهتر شود، چون ما مکانهایی برای بیان خارج از مغز، درست از
ابتدا پیدا کردیم. در واقع، per RNA در سراسر این مکان یافت
شده است و کاملاً گیجکننده است. البته، حالا ما میدانیم که در اکثر این موارد، بیان per را داشته باشیم که مرتبط با فعالیت ساعت
مستقل است.
تمرکز اینها در مغز غافلگیرانه بود. در دهه ۱۹۷۰، هستههای فوق کیاسمایی به مدت چندین سال،
هستههای مرکزی در نظر گرفته میشدند. بعد از آن همه چیز بههم خورد. در سال ۱۹۹۷ جف هال17
و استیو کی18 مقالهای در مجله ساینس منتشر کردند
که نشان میداد ساعتهای شبانهروزی در سراسر بدن مگس سرکه وجود دارند
[۱۴]. کمی بعد از آن، در سال ۱۹۹۸، اوئلی شیبلر19 در ژنو نشان داد که
فیبروبلاستهای کشت دادهشده رَت ساعتهای خود را دارند. نوسانات روزانه با
طول متوسط ۵/۲۲ ساعت در سلولهای این جونده ثبت شدند [۱۵].
سپس ساعتهای کبد، لوزالمعده، ریه و
ماهیچهها گزارش شد. این ساعتها گاه با همکاری میکنند و گاه با هم در تضادند.
کدام بخش از کار روی ژنتیک و
زیستشناسی مولکولی ریتمهای زیستی مگس سرکه میتواند مرتبط با پزشکی انسانی باشد؟
ما با کشت سلولهای انسانی کار میکنیم، با بیماران و سلولهای کاشتهشده کار میکنیم تا به اختلالات خواب نگاه کنیم.
کاملاً واضح است که چیزهای زیادی در مورد اختلالات خواب و وراثت از این نوع
مطالعات بهدست میآید.
در واقع، دو نوع اختلال خواب
شبانهروزی مشخص وجود دارد: سندروم
فاز خواب پیشرفته و سندرم فاز خواب به تأخیر افتاده. سندرم فاز خواب پیشرفته
خانوادگی با یک جهش ژنی در کروموزوم ۲ در یکی از اجداد پیوند خورده است. ژن تغییر یافته پریود۲ است که در
ابتدا در مطالعات ریتم شبانهروزی مگس سرکه شناسایی شد. در اختلالات
انسانی، اعضای بیمار خانواده بیمار در حدود یک ساعت پس از غروب آفتاب به خواب میروند در ساعت ۴ صبح بیدار میشوند.
درست است. اما حوزه پژوهش درباره
ساعت به سرعت به قسمتهای بسیار متفاوتی از زیستشناسی انسان یا پستانداران منتشر شده است. انواعی از چیزهایی که من قابلتوجه مییابم، آزمایشهایی است که در آن برخی از این ژنها غیرفعال شدهاند. ما پیآمدهای متابولیک برخی از اینها را پیدا میکنیم.
برخی از موشهای مدل که ریتم شبانهروزی آنها از لحاظ ژنتیکی مهندسی شدهاند، چاق هستند و علایم یک سندرم
متابولیک را نشان میدهند. فقدان عملکرد ساعتهای درونزاد در کبد ممکن است هیپوگلیسمی ایجاد
کند. برخی از ساعتهای موجود در سلولهای جزایر لوزالمعده موشهای از پای درآمده، در تحمل گلوکز مشکل
دارند و انولین کمتری ترشح میکنند. مطالعات این جهشیافتهها نشان میدهد که پاسخ انسولین به گلوکز در آنها کاهش یافته است و این نشان میدهد که ساعت پانکراس میتواند عامل اصلی حساسیت انسولین طبیعی و
حفاظت در برابر دیابت باشد.
جالب است که در واکنش به زخمها، تنظیم شبانهروزی در فرایند بهبود پوست وجود دارد.
تحقیقات اخیر حاکی از آن است که از دست دادن یک بخش پروتئینی از پروتئین شبانهروزی per منجر به ترمیم معیوب جراحت موشها میشود. همچنین نشان داده شده است که موشهای فاقد ژن Per1، Per2، Cry1 و Cry2 رشد تومورهای خود به خودی و شعاعی را افزایش میدهند. بنابراین، مجموعه وسیعی از آسیب
به ساعتها وجود دارد که در حال حاضر
شاهد آن هستیم. در پستانداران مشاهده میکنیم
که ریتم شبانهروزی چیزی بسیار بیشتر از یک
رفتار عادی است.
ریتم شبانهروزی چه اهمیتی برای درک سرطان دارد؟
هنوز مشخص نیست که چرا تغییرات
ریتم شبانهروزی بر فراوانی سرطان تأثیر میگذارند. سرطان در ارتباط با کار شیفتی
بوده است. همانطور که گفتم، در موشها، این همراه با از دست دادن ژنهای ساعت است. این امکان وجود دارد که
عناصری حفاظتی از ریتم شبانهروزی در رابطه با سازوکارهای پاسخ به آسیب DNA وجود داشته باشد. چیزی که ما در برخی از این
موارد شاهد آن هستیم، یک خطای پاسخ به DNA است که در فرودست نبودِ ریتم شبانهروزی وجود دارد. من فکر میکنم در آینده در مورد مسیرهای سرطان در
موشهای جهشیافته که نرخ بالاتری از تشکیل تومور را
دارند، بیشتر درخواهیم یافت.
بازگشت به آینده
آیا ممکن است یک دیدگاه تاریخی
کوتاه از اولین مشاهدات ساعتهای شبانهروزی ارائه دهید؟
آندروستنز20 منشی
اسکندر در قرن چهارم پیش از میلاد، یکی از اولین کسانی بود که مشاهدات خود را از
ساعتهای شبانهروزی ثبت کرد. همچنین ژان ژاک21 ستارهشناس
فرانسوی مشاهده کرد گلهای آفتابگردان صبح باز و نزدیک غروب بسته میشوند، حتی در غیاب یک چرخه نوری ـ
تاریکی. او میخواست بداند محیط تا چه حد بر
فعالیتهای گیاهان تأثیر میگذارد و دریافت وقتی این گیاهان را به
زیرزمین میبرد، فعالیتهای باز و بسته شدن گلهای خود را به مدت چند روز همچنان ادامه
میدادند. در سال ۱۷۲۹، دورتوس
دمارین22 سازوکاری ذاتی کشف کرد که به گیاهان اجازه میداد تا پیشبینی کنند که چه موقع انتظار دارند
خورشید سر بزند و چه موقع غروب کند.
مردم همیشه مجذوب زندگی شخصی
برندگان جایزه نوبل هستند. آیا میتوانید
کمی درباره زندگی همسرتان که او نیز دانشمند و برنده جایزه نوبل است، به ما
بگویید؟
در آستین، در دانشگاه تگزاس،
زمانی که ما هر دو دانشجوی دوره کارشناسی بودیم، همدیگر را ملاقات کردیم. او و من
با هم یک مسیر ژنتیک را انتخاب کرده بودیم. او خیلی باهوش بود. یک سال بعد، مشاورِ
من مشاورِ او هم شد. او باعث شد من با همسر آیندهام بیشتر آشنا شوم.
بعداً هر دوی ما به استنفورد
رفتیم. او در بخش ژنتیک بود و من در بخش بیوشیمی. ما در یک طبقه بودیم، اما در گوشه
متفاوت.
بعد تصمیم گرفتیم بیاییم به
نیویورک. من در اینجا مشغول شدم و دو سال بعد او به عنوان دانشجوی پسادکتری به
اینجا آمد. در حال حاضر، او رئیس برنامه دکترای علوم زیستی در همه دانشگاههای شهر نیویورک است. به علاوه، درباره
ژنتیکِ ایمنی تحقیق میکند. بنابراین، ما هنوز صحبتهای زیادی در مورد ژنتیک و زیستشناسی با هم داریم.
فرزند هم دارید؟
دو تا دختر داریم که اکنون حدود
۳۰ ساله هستند. آنها در خانهای بزرگ شدهاند که در تمام مدت پر از علوم بوده
است. من قبلا مگسهای سرکهای با جهشهای مختلف به خانه میآوردم. صبحها که میخواستم بروم، میگفتم: «بسیار خوب، من میخواهم شب برای شما مگس سرکه بیاورم». یکی
از آنها میگفت: «اوه، من یک مگس چشمقرمز میخواهم» یا «من یک چشمسفید میخواهم»، یا «چشمزرد میخواهم»؛ چیزهایی مثل این. بنابراین من
به درخواست آنها توجه میکردم و چیزهایی از مجموعهمان میآوردم.
ممکن است کمی درباره سرگرمیهای خود به ما بگویید؟
ما زمان زیادی را در نیومکزیکو
سپری کردیم. در یکی از درههای کوههای راکی که به نیو مکزیکو سرازیر میشوند، جایی داشتیم. در شمال غربی
سانتافه.
اغلب اوقات ما بهپیادهروی و جمعآوری فسیل میرویم. ساختار زمینشناختی آنجا واقعاً تماشایی است. لایههای آن در زمانهایی طولانی تهنشین شدهاند. میتوانیم در آنجا در دورههای بسیار متفاوتی قدم بزنیم؛ در پایین
یکی از درههای باریک، صخرهها حدود ۲۵۰ میلیون سال قدمت دارند و
مربوط به پرمین هستند. مجموعههایی از فسیلهایی که در آنجا پیدا میشوند، بسیار ابتدایی و بیشتر هم فسیلهای گیاهی هستند. وقتی از دیواره این دره عبور میکنید، به مناطقی برخورد میکنید که متعلق به تریاس هستند و حدود
۲۰۰ تا ۲۲۰ میلیون سال قدمت دارند و پر از استخوانهای دوزیستان هستند. نقشههای زمینشناختی و عمر سنگهای آنجا از سوی سازمان زمینشناسی نیومکزیکو تولید شدهاند، بنابراین همیشه دقیقاً تاریخ
تکاملی هر نقطه را میدانیم.
آیا در اوایل دهه ۱۹۸۰، هرگز
تصور میکردید که سی سال آینده را صرف
کار روی ریتمهای رفتاری شبانهروزی خواهید کرد؟ علاقه خود را نسبت به
این موضوع چطور توضیح میدهید؟ آیا چیز دیگری غیر از کنجکاوی
خالص ذهنی شما وجود دارد و شما چگونه به این موضوع علاقهمند ماندهاید؟
این سؤال خوبی است. شما میدانید که چه اتفاقی افتاد. در اصل یک
مشکل کوچک بهنظر میرسید. در آن زمان امیدوار بودیم که
سریعاً پاسخ را بیابیم، شواهدی پیدا کنیم که ژن پریود باعث بینظمی میشود؛ اما کار مدت زیادی طول کشید.
در ابتدای دهه ۱۹۹۰، ما چندین
ژن بهدست آوردیم که ویژگیهای بسیار جالبی داشتند. وقتی وارد این
قضیه شدیم، انواع سؤالات و تعداد رویکردها افزایش یافت. باید در زمینههای متنوع، از ژنتیک گرفته تا زیستشناسی مولکولی و تا زیستشناسی سلولی و بیوشیمی کار میکردیم. همیشه کارهای زیادی برای انجامدادن وجود داشته و چیزهای جدید سر راهمان سبز میشوند. زیر هر سنگی که جابهجا میکنیم، سؤالات جدیدی پیدا میشود.
در طول مدتی که روی ریتمهای شبانهروزی کار میکردیم، روی چیزهای دیگر هم کار میکردیم. مدتی روی عناصر جهنده در ژن Notch هنگام نمو اولیه کار کردیم؛ اما در پاسخ به
سؤالاتمان درباره CLOCK جوابهایی
که دریافت کردیم به جای انقباض، به رشد اشاره داشتند. فکر میکنم این چیزی است که باعث شد من هر چه
بیشتر و بیشتر برای حل مشکل ساعتهای شبانهروزی و دور از موضوعات دیگری که به نظر
میرسد با سرعتی باورنکردنی رشد میکنند، در آزمایشگاه تلاش کنم.
به نظر خودتان استعداد اصلی و
ویژگیهای شخصیتیتان به عنوان یک دانشمند چیست؟
مداومت و پافشاری کار خوبی است.
میدانید، دفعات زیادی وجود دارد
که ما راه جلو پایمان را ندیدهایم؛ ولی به پیشروی ادامه دادهایم و به سرنخهایی رسیدهایم.
من همیشه به سیر تکاملی علاقه
داشتهام: تنوع جانداران و انواع
مختلف سازگاری آنها در گونهها، سردهها و راستههای مختلف. بنابراین، اینها همه رمزهایی هستند که در حال کشفشدناند و مرا علاقهمند نگه میدارند.
من متوجهشدهام که به بسیاری از حوزههای زیستشناسی علاقه دارم. این به من کمک کردهاست تا به نتایج جدید برسم و توجه داشته
باشم که نتایج جدید را میتوان از جهات مختلف تحت مشاهده
قرار داد.
فکر نمیکنم که قبلاً همه از ریتمهای شبانهروزی مطلع بودند، مثلاً وقتی که من
دانشجوی کارشناسیارشد بودم. فکر میکنم این موضوع کمک زیادی بهمن کرد. در کودکی در معرض بسیاری از
پدیدههای زیستی عمومی بودم، به گونهای آماده بودم که چنین مشکلاتی را تحمل
کنم.
چه توصیهای برای دانشمندان جوانی دارید که میخواهند کار شما را ادامه دهند؟
باید چیزهایی را که به آنها علاقهمندند، دنبال کنند و خیلی سریع به
چیزهایی که کاملاً عملی به نظر میرسند، کشیده نشوند. من فکر میکنم در حال حاضر گرایشی به این سمت وجود
دارد. چیزهای عملی و ایمن وجود دارد که دانشمندان میتوانند انجام دهند و چیزهایی هم وجود
دارند که لزوماً پرخطر نیستند، بلکه ذاتاً توان بیشتری برای هیجانبخشی دارند. فکر میکنم توصیه من این است که به خودتان این
فرصت را بدهید که چیزی جدید و واقعاً هیجانانگیز
پیدا کنید.